AnswersPublished13 sources
Зір, а не лобова частка: нове дослідження переписує еволюцію мозку приматів
Нове дослідження, опубліковане 6 серпня 2026 року в журналі Science, спростовує теорію, що збільшення мозку приматів відбулося завдяки зростанню лобової частки. За допомогою мікро КТ сканування черепів, що охоплюють 56 мільйонів років, дослідники виявили, що лобова частка зберігала сталу пропорцію відносно загальног...
ОпублікувавВідредаговано за допомогою DeepSeek-V4-FlashЗображення створено за допомогою GPT Image 1.5
Research answer
Key takeaways
- Нове дослідження, опубліковане 6 серпня 2026 року в журналі Science, спростовує теорію, що збільшення мозку приматів відбулося завдяки зростанню лобової частки.
- За допомогою мікро КТ сканування черепів, що охоплюють 56 мільйонів років, дослідники виявили, що лобова частка зберігала сталу пропорцію відносно загального розміру мозку в усіх приматів.
- Замість цього, зорові ділянки мозку (потилична, тім'яна та скронева частки) розширювалися швидко та непропорційно, особливо у довгоп'ятів та антропоїдів (мавп, людиноподібних мавп і людей).
- Збільшення отвору зорового нерва в черепах свідчить про зростання обсягу візуальної інформації, яка надходила до мозку, що й стало головним рушієм еволюції.
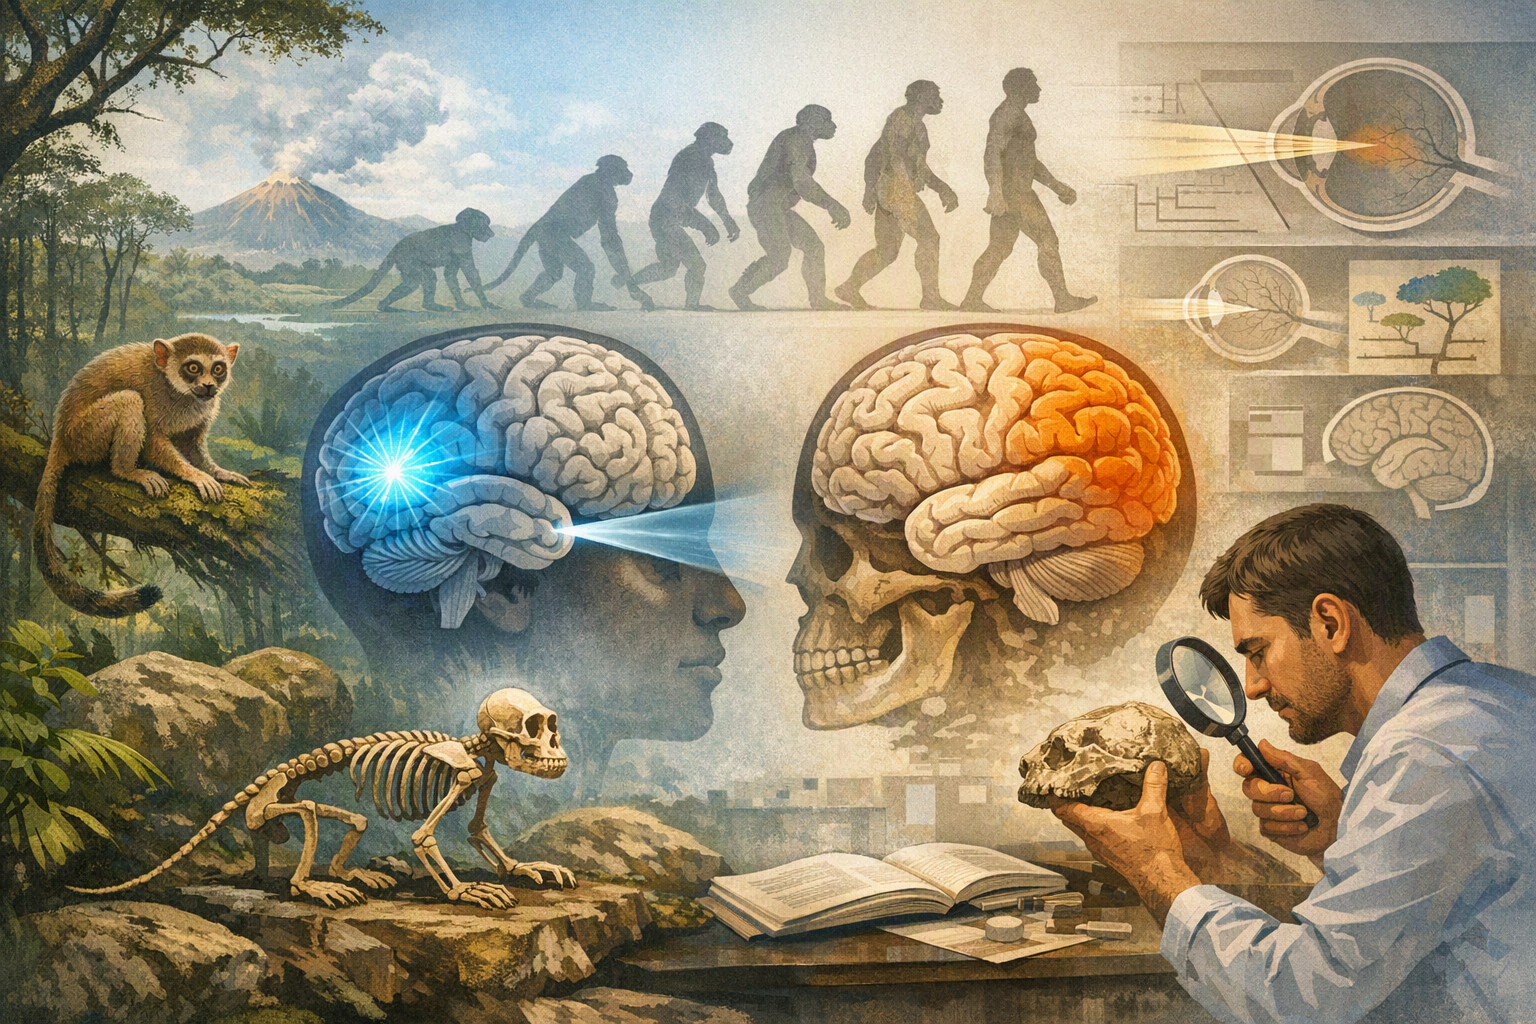
AI Prompt
openai.comCreate a landscape editorial hero image for this Studio Global article: How did vision, rather than independent frontal lobe expansion, drive primate brain evolution over the past 56 million years, and what does. Article summary: *Frontal lobes scaled predictably, not independently**. Topic tags: general, government, education, academic, general web. Style: premium digital editorial illustration, source-backed research mood, clean composition, high detail, modern web publication hero. Use reference image context only for broad subject, composition, and topical grounding; do not copy the exact image. Avoid: logos, brand marks, copyrighted characters, real person likenesses, fake screenshots, UI text, readable text, watermarks, charts with fake numbers, clickbait thumbnails, icons, and tiny thumbnail layouts. Make it useful as an illustrative visual, not as factual evidence.
Протягом десятиліть вважалося, що еволюція мозку приматів, включно з людиною, відбувалася завдяки значному збільшенню лобової частки — ділянки, відповідальної за планування, судження та соціальне мислення. Однак нове дослідження, опубліковане 6 серпня 2026 року в журналі Science під керівництвом Річарда Ф. Кея (Університет Дьюка) та Кріса Органа (Університет штату Монтана), повністю перевертає цю теорію .
Studio Global AI
Continue your research
This page includes a source-backed answer you can continue inside Studio Global.
People also ask
What is the short answer to "Зір, а не лобова частка: нове дослідження переписує еволюцію мозку приматів"?
Нове дослідження, опубліковане 6 серпня 2026 року в журналі Science, спростовує теорію, що збільшення мозку приматів відбулося завдяки зростанню лобової частки.
What are the key points to validate first?
Нове дослідження, опубліковане 6 серпня 2026 року в журналі Science, спростовує теорію, що збільшення мозку приматів відбулося завдяки зростанню лобової частки. За допомогою мікро КТ сканування черепів, що охоплюють 56 мільйонів років, дослідники виявили, що лобова частка зберігала сталу пропорцію відносно загального розміру мозку в усіх приматів.
What should I do next in practice?
Замість цього, зорові ділянки мозку (потилична, тім'яна та скронева частки) розширювалися швидко та непропорційно, особливо у довгоп'ятів та антропоїдів (мавп, людиноподібних мавп і людей).
Sources
pubmed.ncbi.nlm.nih.govFossil evidence favors a role for vision in the modular ...
montana.eduMontana State researcher helps rewrite understanding of ...
phys.orgFossil study finds vision—not the 'thinking' frontal lobe— ...
nature.com